?

The Characteristics and Development of Induced ERP of Pain Empathy: A Meta-analysis Review

  • Juan SONG , *, 1, 2, 3 ,
  • Yiyue CHEN 4 ,
  • Tuo LIU 1, 2, 3 ,
  • Yan CHEN 5 ,
  • Qing LIU 2 ,
  • Wanqing BU 2
Expand
  • 1. Key Research Base of Humanities and Social Sciences of the Ministry of Education, Academy of Psychology and Behavior, Tianjin Normal University, Tianjin 300387
  • 2. Faculty of Psychology, Tianjin Normal University, Tianjin 300387
  • 3. Tianjin Key Laboratory of Student Mental Health and Intelligence Assessment, Tianjin 300387
  • 4. Faculty of Psychology, Beijing Normal University, Beijing 100875
  • 5. School of Psychology, Guizhou Normal University, Guiyang 550025

Received date: 2024-04-15

  Online published: 2026-08-31

Copyright

Copyright reserved © 2026.

Abstract

Meta-analysis techniques were used to investigate the changes of early and late brain amplitude induced by pain empathy, and to explore the moderating effects of age and stimulus type. A meta-analysis of 246 effect sizes from 72 studies found significant pain empathy effects on the early components N1, N2, and the late components P3 and LPP. Cognitive empathy and emotional empathy continued to develop from preschool to middle childhood, and then cognitive empathy gradually dominated, reaching a peak in adolescence and then decreasing. The proportion of emotional empathy increased during the transition from adolescence to adulthood. The moderating effect of stimulus type was significant, with auditory stimulation showing anadvantage over facial and limb stimulation. The results of this study provide more quantitative evidence for the lifelong development of empathy.

Cite this article

Juan SONG , Yiyue CHEN , Tuo LIU , Yan CHEN , Qing LIU , Wanqing BU . The Characteristics and Development of Induced ERP of Pain Empathy: A Meta-analysis Review[J]. Studies of Psychology and Behavior, 2026 , 24(4) : 474 -482 . DOI: 10.12139/j.1672-0628.2026.04.006

1 引言

疼痛的感受常通过面部表情(如哭声)、肢体语言等行为反应表达出来,是引发他人关注的重要信号。疼痛共情(empathy for pain)是对他人疼痛体验的识别、分享、理解、评价(Lamm et al., 2011),是对他人的疼痛经历的感同身受(孟景 等, 2010)。疼痛共情及对其他负面情绪的共情在神经网络激活上有重叠现象,但疼痛共情在双侧中岛叶和中扣带皮层脑区有自己特殊的激活过程(Timmers et al., 2018),因此疼痛共情的神经机制是共情研究领域的焦点(孟景 等, 2010)。疼痛共情中既有帮助个体快速识别危险信号的过程,对威胁生命和个人安全的信号进行快速反应,又是亲社会行为和良好人际互动的基础,对个人身心健康发展和群体关系、社会和谐都有重要意义。

1.1 疼痛共情的神经机制

疼痛共情的过程包含自下而上的情绪共情过程和自上而下的认知共情过程(Gladstein, 1983)。情绪共情是个体自动化的分享他人情绪情感,从而产生情感共鸣,激发相似情感体验;认知共情是个体理解、评价他人感受,推断内心状态的过程。脑成像研究表明,情感过程激活前脑岛和前扣带回(Lamm et al., 2007; Lamm et al., 2011; Morrison et al., 2004; Singer & Lamm, 2009; Singer et al., 2004),认知过程更多激活内侧前额叶皮层、颞上沟、颞顶联合区和颞极等心智化相关脑区(Carrington & Bailey, 2009; Frith & Singer, 2008; van Overwalle & Baetens, 2009)。共情过程同时包含情感和认知内容,在疼痛共情中的占比随研究及背景的不同而变化(黄翯青, 苏彦捷, 2010)。
脑成像研究时间分辨率较低,而事件相关电位(event-related potentials, ERP)技术时间分辨率高,能够研究心理过程的时间进程,因此常用于考察大脑对伤害/威胁性刺激和线索的电生理学过程及反应。现有疼痛共情ERP研究多关注N100(N1)、N200(N2)、P300(P3)和晚期正电位(late positive potential, LPP)。其中,N1是时间窗口范围在90~100 ms内的脑电成分,体现了新异刺激出现后的早期注意过程(Vogel & Luck, 2000);N2约为180~230 ms,反映情绪情感的激发和对刺激的早期加工过程(Cheng et al., 2012)。P3与LPP都是300 ms后的晚期成分,体现了注意和处理反应动机下的刺激的过程(Hajcak & Olvet, 2008)。
ERP研究发现,疼痛共情中,共情早期以情绪情感分享为主,晚期以对情绪及背景的认知评价为主(Fan & Han, 2008)。Fan和Han发现,任务要求不调节疼痛共情的早期N1和N2成分,而会调节晚期P3成分,表明100~300 ms的脑电成分(如N1、N2)与无意识、自动的情绪情感分享过程有关(Decety, 2015; Decety et al., 2010);300 ms以后的成分(如P3、LPP)是有意识、控制性的注意和评价疼痛刺激的指标(Cheng et al., 2012)。许多研究发现,疼痛刺激较中性刺激诱发更大的N1、N2、P3和LPP波幅(Addabbo et al., 2021; Cheng et al., 2014; Decety, 2010a, 2010b),但结果仍不一致。Coll(2018)发现疼痛共情诱发的N1、N2波幅效应量具有较高异质性,N2究竟反映早期自动化情绪分享还是对威胁的快速识别、注意和监测仍有争议。Wang等人(2023)发现疼痛刺激诱发更小的N2波幅,认为疼痛刺激作为威胁信号可能更易被识别和自动化加工,表现为N2波幅的降低(Meng et al., 2012),也有研究未发现疼痛共情中N2波幅的显著变化(Song et al., 2019)。P3、LPP虽被认为是较稳定可靠的指标,但也存在异质性(Coll, 2018),且有研究发现中性刺激诱发更大的脑电指标和反应(Addabbo et al., 2021),也有研究显示,疼痛刺激与中性刺激引发的指标无显著差异(Jia et al., 2023)。因此,需进一步探讨疼痛共情诱发的早期和晚期脑电成分波幅的变化及其影响因素。

1.2 疼痛共情的发展

疼痛共情诱发的早、晚期脑电成分实质上反映其情绪情感过程和认知评价过程,而年龄是重要影响因素。共情的双过程发展模型认为,情绪共情从婴儿期到老年期大致呈U形曲线,认知共情则呈倒U形曲线(黄翯青, 苏彦捷, 2012)。情绪共情出现在生命的较早阶段,例如婴儿期就有情绪感染的现象;认知共情过程则出现较晚,受到心智化过程、自我与他人的分化过程的发展与成熟的影响,并在青春期后呈现逐渐减弱趋势,该模型得到研究支持(王启忱 等, 2021; 魏祺, 苏彦捷, 2019; 吴雨蓓, 刘欣禹, 2020; 武侠 等, 2020; 袁晓劲 等, 2019)。一项元分析发现,幼儿共情中主要是情绪共情成分;儿童中期和成年早期,认知共情在共情中的占重要作用,成年中期和晚期又是情绪共情为主导(颜志强, 苏彦捷, 2021)。情绪共情的自动化分享特点在共情发展的早期已出现,并趋于成熟和稳定,而认知共情会随着大脑前额叶功能的发展、控制能力的增强而逐渐发展成熟起来。但该研究数据均来自自陈量表,仍需更客观的证据支持。
ERP研究为疼痛共情的发展差异提供了更客观的证据。众多研究认为,LPP波幅增加可能是儿童认知评价成熟度的指标 (Hajcak et al., 2010; Kujawa et al., 2012)。Cheng等人(2014) 发现,儿童青少年共情过程的脑电成分表现出发展特点,N2成分波幅随年龄增长呈下降趋势,LPP成分波幅随年龄增长呈现上升趋势,说明儿童在共情中从情绪过程向认知过程转化,从情绪分享向评价被共情者、决策是否进行助人行为等过渡。发展到青春期,个体情绪情感分享、认知调节和评价过程可能还未成熟(Steinberg, 2008)。Mella等人(2012)发现,青春期被试在观看痛苦刺激时的相关脑电成分都表现为波幅增大。现有ERP研究虽探讨了疼痛共情的年龄差异,但难以覆盖完整年龄区间,缺少统合视角的研究结果。
疼痛共情还会受到多种因素影响(Sun et al., 2017),可以通过肢体语言(姿势、手势)、视觉刺激、声音的表情等线索识别和判断他人的痛苦(Meng et al., 2017)。Sun等人发现,在疼痛共情早期,面部表情刺激优先于身体表情刺激被处理,主要体现在N1和顶叶正成分(vertex positive potential, VPP)上,且只有面部表情会诱发更大的LPP波幅。Lang等人(2011)发现,听到他人痛苦的声音刺激激活的脑区与视觉疼痛刺激相似。婴幼儿在前言语阶段已能通过声音信息表达、接收、理解情绪信息(Barr et al., 2001),疼痛相关的声音刺激可能引发更迅速、强度较大的共情反应。因此,疼痛共情诱发的脑电成分会受到刺激材料的内容和类型等因素的调节。这也与Fan和Han(2008)的研究发现是一致的。
传统文献综述难以得出定量结论,且存在文献搜索范围不清、研究质量和样本量影响难以控制、无法检验调节变量等局限。元分析能够定量整合研究结果并考察潜在调节变量。鉴于现有疼痛共情ERP研究结果仍存在争议,有必要对其进行系统整合和定量分析,以澄清研究间差异,并探讨可能影响结果的调节因素。
综上所述,疼痛共情诱发的早期和晚期脑电波幅还存在争议,虽然众多研究发现N1、N2、P3、LPP均存在显著疼痛共情效应,但也有研究得出不一致结论。虽然Coll(2018)运用元分析对共情的ERP研究进行了探讨,但其主要关注ERP在共情研究中的有效性及以往研究的方法学问题,并未充分讨论年龄和刺激材料类型等调节变量。因此,本研究拟采用元分析的方法,对现有疼痛共情ERP研究结果进行收集和汇总,澄清现有争议,重点考察年龄变量及刺激材料类型的调节作用,并从神经机制角度验证疼痛共情的毕生发展模型,为疼痛共情两成分的发展轨迹提供支持性证据。本研究也可为不同年龄段个体的共情培养、疼痛评估和心理支持提供参考。

2 研究方法

2.1 文献检索和筛选

本研究检索中文、英文数据库获取文献。中文数据库包括中国知网、维普、万方数据库,检索词为“疼痛共情”分别与“事件相关电位”“ERP”“EEG”搭配;英文数据库包括Web of Science、PubMed、Google Scholar,检索词为“empathy for pain”“pain empathy”分别与“ERP”“EEG”“event-related potentials study”搭配,共获得2005至2023年间文献1492篇。为避免遗漏,本研究还通过筛选文献的引文补充符合要求的文献。
参考PRISMA声明的标准(Moher et al., 2009),按照以下标准筛选文献:(1)采用事件相关电位技术的疼痛共情实证研究;(2)报告N1、N2、P3、LPP中的一种或多种脑电成分;(3)包含疼痛和中性刺激诱发的可用于计算效应量的ERP数据;(4)未报告符合要求或可转换效应量的研究,经向作者索取获得后纳入;(5)被试为典型发展群体;(6)语言为汉语或英语;(7)报告被试平均年龄或年龄范围;(8)样本量明确。最终纳入文献72篇,其中中文文献16篇,英文文献56篇。文献筛选流程图见图1。
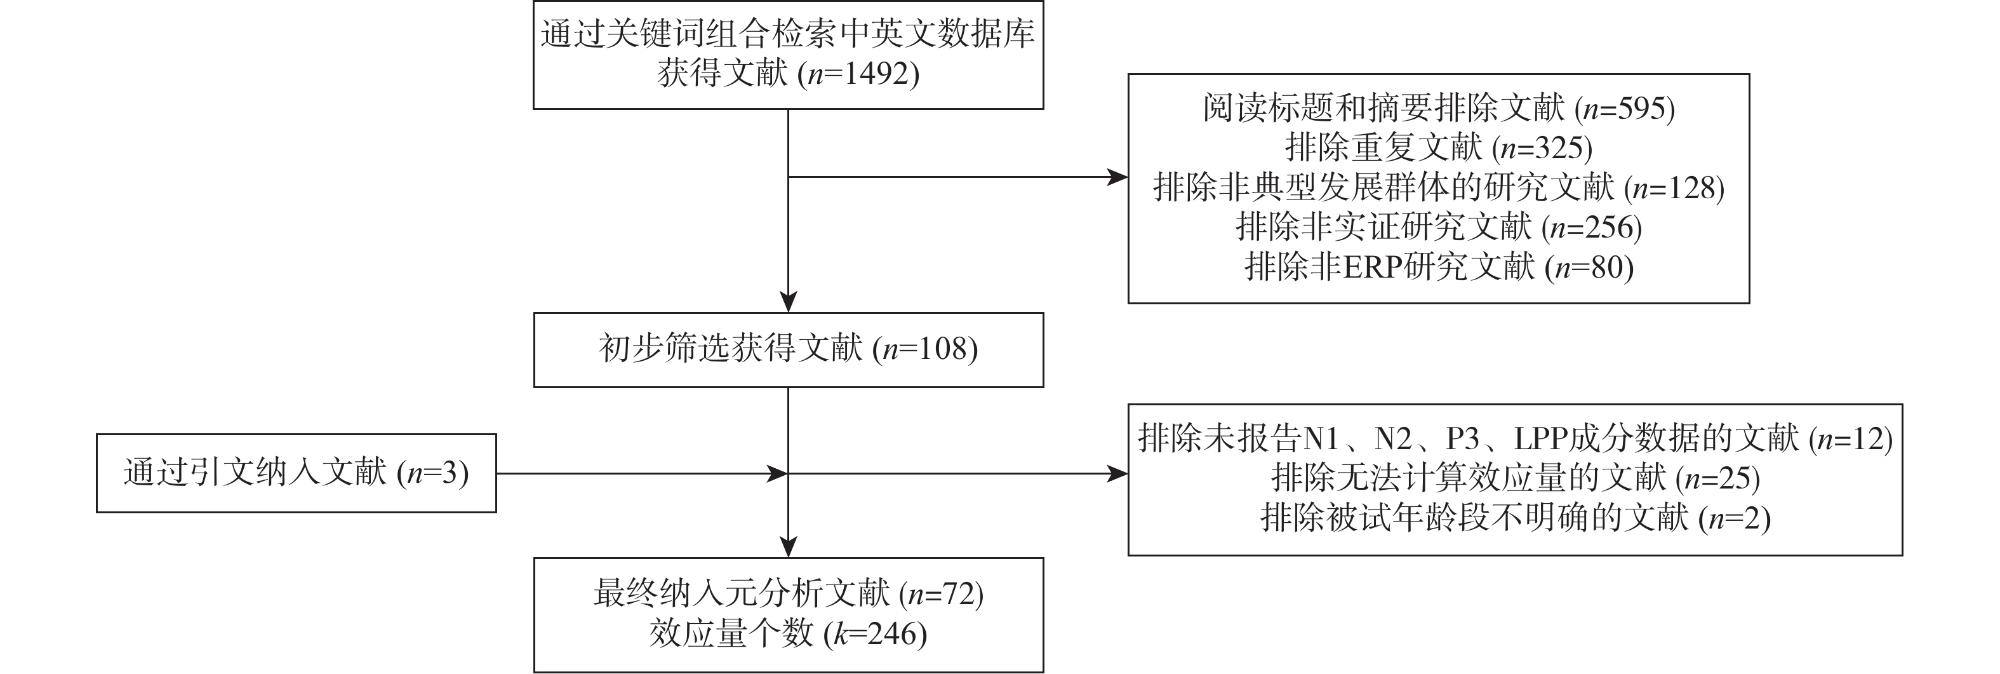
图1 元分析文献筛选流程图

2.2 文献编码及质量评价

由两位研究者进行编码,编码内容包括:(1)文献信息(第一作者、发表年份);(2)被试平均年龄;(3)发展阶段;(4)样本量;(5)脑电成分;(6)发表类型(期刊类别或学位论文)。发展阶段划分参照颜志强和苏彦捷(2021)的方法,将平均年龄3~6岁划分为学前期,6~12岁为儿童中期,12~20岁为青春期,20~40岁为成年早期;纳入分析的文献中,所有参与者均处于上述四个发展阶段,不涉及其他年龄段。纳入文献来源包括SCI、SSCI、中文核心和学位论文,基本可以避免低质量文献的纳入(孙亚茹 等, 2023)。采用Cochrane Collaboration偏倚风险评估工具(Cochrane Collaboration’s tool for assessing risk of bias)对单个研究进行质量评估,主要包括6个维度7个条目:选择偏倚(随机序列产生、分配隐藏)、实施偏倚(对研究者和被试施盲)、测量偏倚(研究结果盲法评价)、随访偏倚(结果数据的完整性)、报告偏倚(选择性报告结果)和其他偏倚。每个条目上低风险计1分,不明确计0分,高风险计−1分,累计得分越高,偏倚风险越小,文献质量越高。

2.3 数据分析

采用R语言(Version 4.3.1)的meta包和metafor包进行元分析。采用Q检验和I2检验来估计纳入研究结果的一致性程度,Q检验p值小于0.05即可说明研究间存在显著异质性;I2越大,异质性越大,高、中、低异质性临界值分别为75%、50%和25%(Higgins et al., 2003)。若Q检验结果显著,且I2高于75%选择随机效应模型更为稳妥合理(Higgins et al., 2003),反之选择固定效应模型。为衡量相较于中性条件,疼痛共情给早期和晚期脑电成分造成的影响,本研究以标准化均值差Hedges’ g作为效应量。相较于Cohen’s d,Hedges’ g对小样本的效应量估计更加精准。Hedges’ g可以根据研究样本量、各成分波幅的M值和SD值等原始数据计算,或根据原始数据的F值或t值进行转换(Grissom & Kim, 2005)。采用漏斗图(funnel plot)、失安全系数(Rosenthal’s fail-safe N)和剪补法(trim and fill method)检验发表偏倚。

3 结果

3.1 异质性检验

四种脑电成分的异质性检验结果见表1,四种脑电成分元分析Q值均达到显著水平,p<0.001,I2值均大于高异质性临界值,表明存在较高异质性,可能存在潜在的调节变量影响疼痛共情诱发的脑电波幅,有必要进行调节效应分析。
表1 异质性检验结果
成分类型Q检验I2检验(%)
Qdfp
N1223.6336<0.00186.93
N2936.5278<0.00193.54
P3824.6686<0.00190.78
LPP501.8742<0.00192.98

3.2 主效应检验

本研究共纳入72篇文献,其中中文文献16篇,英文文献56篇,共包含246个效应量,总样本量为2018。结合异质性检验结果,本研究采用随机效应模型分别分析四种脑电成分。主效应检验结果见表2。根据Cohen(1992)对大、中、小效应量的划分标准,即0.8、0.5和0.2,P3和LPP为大效应量,N2为中等效应量,N1效应量较小。
表2 主效应检验结果
成分类型 k 效应值及95%置信区间 双尾检验
Hedges’ g 下限 上限 Z p
N1 37 0.26 0.01 0.50 2.01 0.039
N2 79 0.75 0.52 0.98 6.27 <0.001
P3 87 1.23 1.02 1.43 11.77 <0.001
LPP 43 1.41 1.09 1.73 8.58 <0.001

3.3 发表偏倚检验

四种脑电成分的漏斗图对称性不高,因此需结合其他检验结果判断发表偏倚。N2、P3、LPP成分的失安全系数分别为693、2565、739,均大于临界值5k+10(k为效应值数量),说明不存在明显发表偏倚;N1成分的失安全系数小于临界值,提示可能存在发表偏倚,因此进一步采用剪补法检验。剪补法结果显示(见图2),N2成分左侧增加7项研究,效应量变化为0.21;LPP成分左侧增加3项研究,效应量变化为0.15;N1和P3成分增加0项研究,效应量未发生变化。综合来看,本研究元分析结果较少受到发表偏倚影响。
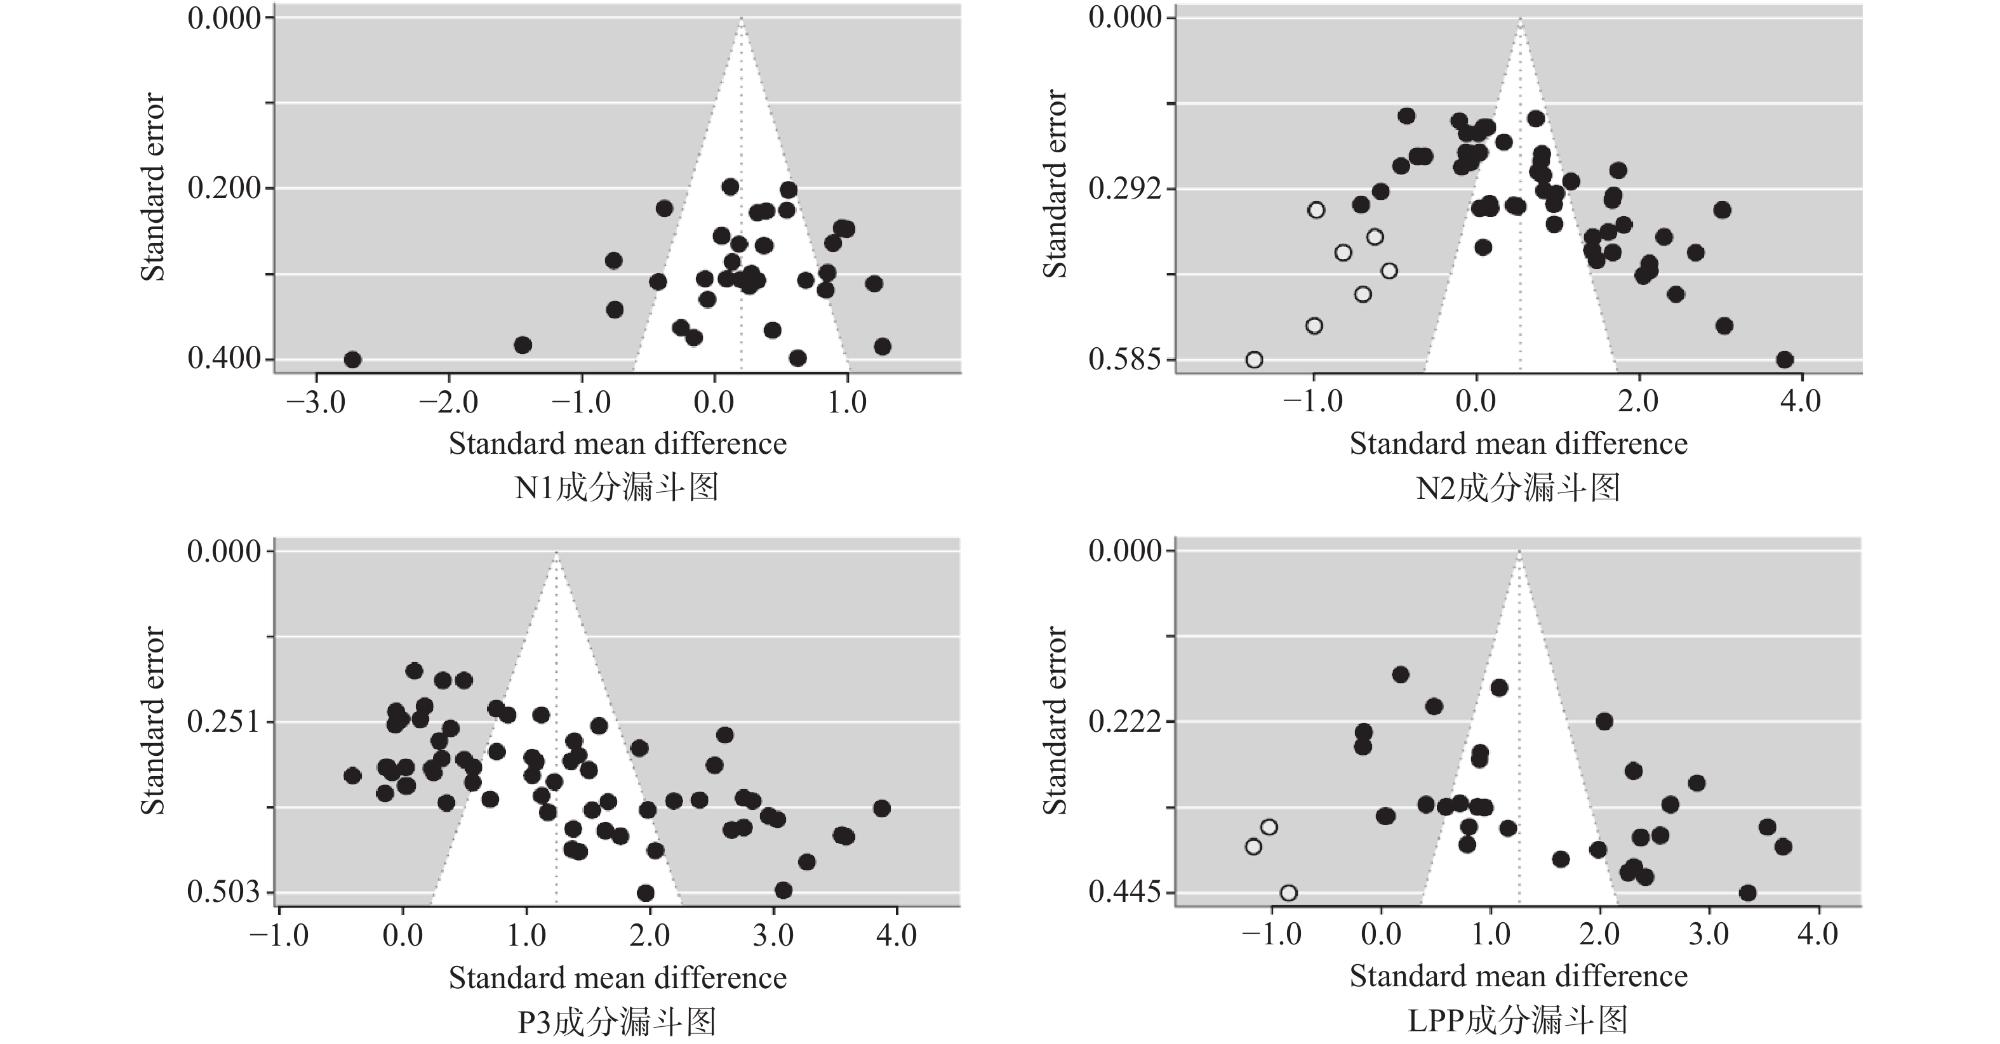
图2 采用剪补法的效应值分布漏斗图

3.4 文献质量评价和敏感性分析

文献质量评价结果显示,纳入元分析的原始研究质量评分为3~5分,平均得分4.73分,标准差为0.51,可以表明纳入的原始研究存在低偏倚风险,质量较好。
采用“去一法”(leave-one-out analysis)进行敏感性分析,以确定当前元分析结果的稳健性。在合并所纳入文献的效应量后,分别对所纳入效应量和原始研究进行逐一排除,重新进行元分析。结果发现,在任意排除所纳入效应量和原始研究后,N1、N2、P3和LPP成分的主效应显著性未改变,四种脑电成分的效应量Hedges’ g系数波动范围分别在0.20~0.33、0.69~0.77、1.20~1.41、1.36~1.49之间,与各成分的总效应量接近,表明当前元分析结果稳健可靠。

3.5 调节效应检验

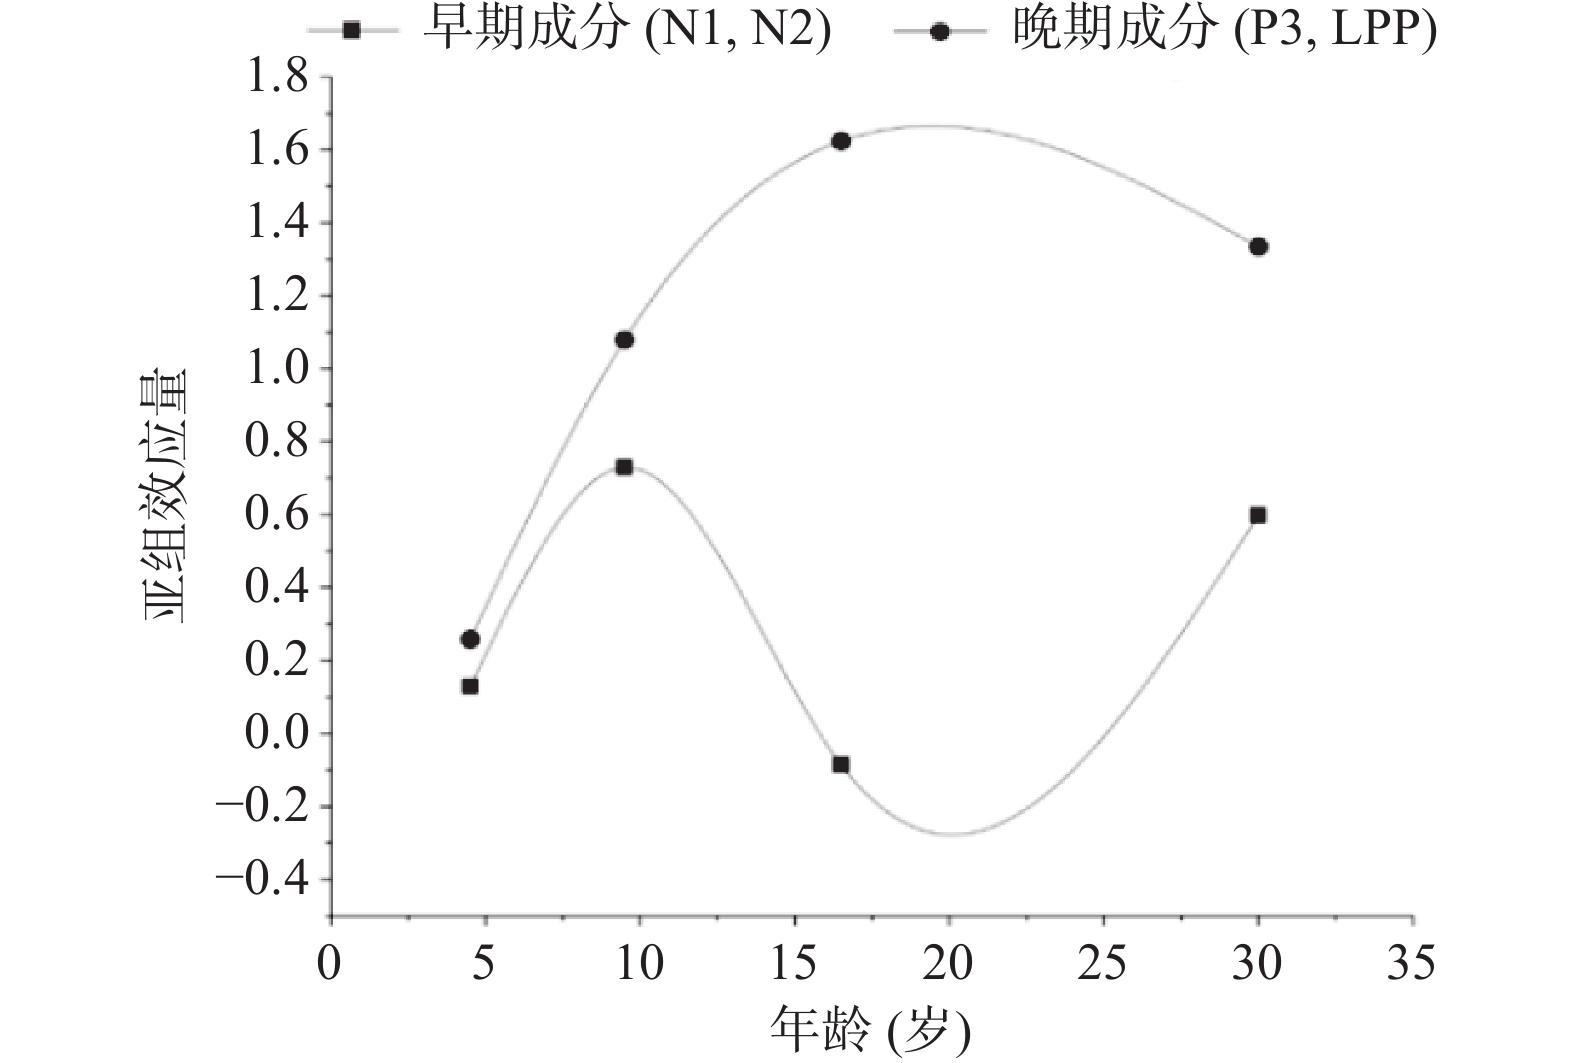
亚组分析结果见表3,年龄对疼痛共情诱发的早期脑电成分N1有显著的调节作用(Q=6.68, p=0.035),成年早期个体的效应量(g=0.31)大于青春期个体(g=−0.19)的效应量;对于早期成分N2,年龄调节效应显著(Q=47.52, p<0.001),成年早期(g=0.89)、儿童中期(g=0.73)、学前期(g=0.13)、青春期(g=0.02)个体效应量大小逐渐递减;对于晚期成分P3,年龄调节效应显著(Q=126.50, p<0.001),青春期个体效应量(g=1.55)大于成年期效应量(g=1.17);对于晚期成分LPP,年龄调节效应显著(Q=80.97, p<0.001),青春期(g=1.70)、成年早期(g=1.50)、儿童中期(g=1.08)、学前期(g=0.26)效应量大小逐渐递减。根据亚组分析结果,绘制疼痛共情诱发早、晚期脑电成分波幅随年龄变化的趋势图,如图3所示。
表3 调节效应分析结果
调节变量 成分类型 异质性检验 类别 k 效应值及95%置信区间
QB df p Hedges’ g 下限 上限
年龄 N1 6.68 1 0.035 青春期 8 −0.19 −0.65 0.28
成年早期 29 0.31 0.06 0.56
N2 47.52 3 <0.001 学前期 3 0.13 −1.02 1.28
儿童中期 2 0.73 −0.67 2.11
青春期 9 0.02 −0.65 0.69
成年早期 65 0.89 0.63 1.14
P3 126.50 1 <0.001 青春期 15 1.55 1.03 2.07
成年早期 72 1.17 0.93 1.41
LPP 80.97 3 <0.001 学前期 3 0.26 −0.90 1.41
儿童中期 2 1.08 −0.33 2.48
青春期 6 1.70 0.85 2.55
成年早期 32 1.50 1.13 1.86
刺激类型 N1 7.14 2 0.068 面孔 5 0.82 0.02 1.44
肢体 29 0.15 −0.14 0.31
声音 3 0.38 −0.39 1.15
N2 66.11 2 <0.001 面孔 30 1.29 0.94 1.63
肢体 47 0.37 0.10 0.64
声音 2 1.74 0.43 3.05
P3 137.82 2 <0.001 面孔 27 1.14 0.76 1.52
肢体 59 1.24 0.98 1.49
声音 1 3.87 1.87 5.88
LPP 75.06 2 <0.001 面孔 8 1.55 0.75 3.77
肢体 33 1.33 0.96 1.69
声音 2 2.30 0.84 3.77

  注:k表示效应量个数,QB表示异质性检验统计量。

图3 学前期至成年早期疼痛共情相关脑电成分的发展趋势

注:以每个年龄段的中点绘制。

刺激类型对疼痛共情诱发下的N1成分调节作用边缘显著(Q=7.14, p=0.068),疼痛面孔刺激的效应量(g=0.82)大于疼痛声音刺激(g=0.38)和疼痛肢体刺激(g=0.15);刺激类型对N2成分的调节作用显著(Q=66.11, p<0.001),疼痛声音刺激的效应量(g=1.74)大于疼痛面孔刺激(g=1.29)和疼痛肢体刺激(g=0.37);刺激类型对P3成分的调节作用显著(Q=137.82, p<0.001),疼痛声音刺激的效应量(g=3.87)大于疼痛面孔刺激(g=1.14)和疼痛肢体刺激(g=1.24);刺激类型对LPP成分的调节作用显著(Q=75.06, p<0.001),疼痛声音刺激的效应量(g=2.30)大于疼痛面孔刺激(g=1.55)和疼痛肢体刺激(g=1.33)。

4 讨论

4.1 疼痛共情诱发早期和晚期脑电波幅的主效应

本研究通过对72篇文献的246个效应量进行分析,发现相较于中性刺激,疼痛刺激会诱发更大的早期脑电成分(N1、N2)和晚期脑电成分(P3、LPP),与多数研究一致,且疼痛效应在晚期成分上更明显。
有研究者认为,在感知他人痛苦和经历痛苦的过程中,情感动机和感觉辨别方面的共同神经表征可能与检测和反应潜在威胁的生存机制有关(Decety, 2010b, 2011)。P3和LPP通常反映对动机相关刺激的持续注意加工和认知评价,不愉快刺激诱发的ERP波幅变化较中性刺激更晚,并可能持续较长时间(Hajcak et al., 2010; Lang & Bradley, 2010)。在共情背景下,这些刺激有助于社会理解和情绪调节(Cheng et al., 2012; Decety et al., 2010; Fan et al., 2014)。更大的晚期成分可能反映较高唤醒水平和注意投入(Bradley et al., 1992; Lang et al., 1993; Ledoux, 1995; Morris et al., 1998),也可能源于疼痛刺激具有观察者导向的威胁属性,会吸引注意以评估潜在危险(Delplanque et al., 2005; Fan & Han, 2008)。

4.2 疼痛共情诱发早期和晚期脑电波幅的调节效应

本研究参照前人的方法,将被试群体划分为学前期(3~6岁)、儿童中期(6~12岁)、青春期(12~20岁)和成年早期(20~40岁)。亚组分析结果显示,年龄对疼痛共情诱发的早期和晚期脑电波幅具有显著调节作用,说明不同年龄段个体的ERP反应不同,反映两种共情成分的发展。由于以N1、P3作为疼痛共情脑电指标的研究仅关注青春期和成年期两个阶段,因此本研究结合N1和N2、P3和LPP波幅探讨两种共情成分的发展轨迹。在早期成分上,成年早期个体诱发的N1、N2波幅均大于其他年龄段;儿童中期个体诱发的N2波幅大于学前期,青春期个体诱发的N2波幅最小。在晚期成分上,LPP波幅从学前期开始随年龄增长而增大,在青春期达到顶峰后降低,P3波幅也在青春期达到顶峰。由于100~300 ms的ERP成分(如N1、N2)常被视为情绪共情指标,300 ms以后的成分(如P3、LPP)常被视为认知共情指标,因此结果表明,学前期至儿童中期总体共情水平提升,儿童中期至青春期认知共情比重增加;向成年早期发展时,认知共情比重降低,情绪共情比重增加。
学前期至儿童中期总体共情水平提升,可能与相关脑区持续发育有关。情绪共情出现较早且趋于自动化,主要依赖镜像神经元系统。镜像神经元系统在自我经历和他人视觉运动观察之间形成习得性关联后出现(Catmur et al., 2009),这种关联在生命早期即已出现,并通过行为和主观内在感受经验发展(Meltzoff & Decety, 2003)。同时,用于评估社会性刺激的腹内侧前额叶虽发育较晚,但在童年时期显著成熟(Decety, 2010a; Leppänen & Nelson, 2009; Luna & Sweeney, 2004)。
儿童中期至青春期,认知共情主导地位逐渐显现并达到顶峰,这与已有研究结果一致(黄翯青, 苏彦捷, 2012)。这一过程可能与自我概念、换位思考能力和道德推理能力的发展有关(Fabes et al., 1999),也体现了共情从情感共鸣向认知理解的发展(Brink et al., 2011; Decety & Michalska, 2010)。随着年龄增长,前额叶认知控制和自上而下情绪调节能力增强(Decety & Michalska, 2010),心理理论(ToM)的神经基质也会在青春期继续发展(Blakemore, 2008)。
青春期向成年早期过渡时,认知共情地位降低,情绪共情比重增加。已有研究发现,成年人对他人痛苦的反应与主观不愉快程度、疼痛判断相关,而青少年的反应与自我报告的认知共情能力相关(Mella et al., 2012)。这可能与青春期后大脑发育和激素水平趋稳有关,也可能与成人社会情感领域的年龄相关增益有关(Carstensen et al., 2003; Magai, 2008)。成年人的动机逐渐转向社会和情感上有意义的目标(Carstensen et al., 2003)。

4.3 刺激类型的调节效应

亚组分析结果显示,声音刺激在N2、P3和LPP上均体现出明显优势,即个体听到疼痛声音时ERP反应更强。已有研究表明,情感韵律在共情的神经认知中具有重要作用(Aziz-Zadeh et al., 2010; Regenbogen et al., 2012),其中音高、音质和节奏等声学特征能够传达情绪状态。因此,声音刺激可能更容易诱发疼痛共情,未来研究可考虑将其作为重要材料。此外,刺激类型在早期成分N1上存在边缘显著的调节作用。面孔刺激在N2和LPP上较肢体刺激诱发更大ERP反应,而肢体刺激在P3上存在优势。疼痛肢体刺激往往包含针头、刀具等物理线索(Sun et al., 2017),疼痛面孔刺激则包含更多社交线索(Grynberg & Maurage, 2014),二者都是疼痛共情的重要情境线索。因此,未来研究可结合多种刺激类型,以更接近日常生活中的自然场景。
本研究通过元分析为黄翯青和苏彦捷(2012)提出的共情发展模型提供了量化证据。该模型认为,认知成分和情感成分的相互作用导致两种成分发展轨迹分离;本研究发现,这种相互作用可能在青春期以后才显现,青春期之前两种成分可能共同发展。未来研究应继续关注二者相互作用机制及其影响因素,并拓宽年龄范围,为刻画不同共情成分的发展轨迹提供更丰富的数据支持。

4.4 研究不足与展望

本研究仍存在不足。(1)被试群体存在局限。纳入研究主要关注学前期至成年早期个体,对婴儿和老年个体关注不足,未来应扩大被试范围,并整合老年人疼痛共情的fMRI研究结果(Moore et al., 2015)。(2)脑电指标选择存在局限。本研究仅选取四种代表性成分,未来应进一步关注其他疼痛共情相关脑电成分。(3)亚组分析中各年龄段数据不够平衡,因此在解释和推广结果时需谨慎。(4)未来还需要更多纵向研究数据加以验证。(5)未来可关注ERP成分时间窗口、纳入分析的电极、刺激呈现时间和刺激间隔时间等变量的调节作用,并采用更丰富的刺激材料。(6)本研究仅针对疼痛共情进行探讨,将结果推广至积极共情时需谨慎。

5 结论

通过元分析发现,在早期脑电成分N1、N2,晚期脑电成分P3、LPP上均存在显著的疼痛共情效应。情绪共情和认知共情呈现出年龄发展的差异,具体表现为学前期至儿童中期个体的总体共情水平不断发展;儿童中期开始,认知共情的地位增加,在青春期达到顶峰后降低;青春期向成年早期过渡时情绪共情的比重增加。相较于面部刺激和肢体刺激,声音刺激能够诱发更强烈的ERP反应。
黄翯青, 苏彦捷. 共情中的认知调节和情绪分享过程及其关系. 西南大学学报(社会科学版), 2010, 36 (6): 13- 19.

黄翯青, 苏彦捷. 共情的毕生发展: 一个双过程的视角. 心理发展与教育, 2012, 28 (4): 434- 441.

DOI

孟景, 陈有国, 黄希庭. 疼痛共情的影响因素及其认知机制. 心理科学进展, 2010, 18 (3): 432- 440.

孙亚茹, 刘泽军, 段亚杰, 陈宁, 刘伟. 协作如何减少记忆错误: 一项元分析研究. 心理学报, 2023, 55 (11): 1780- 1792.

DOI

王启忱, 刘赞, 苏彦捷. 共情的毕生发展及其神经基础. 中国科学: 生命科学, 2021, 51 (6): 717- 729.

DOI

魏祺, 苏彦捷. 学龄前儿童中的共情及其不同成分. 心理技术与应用, 2019, 7 (9): 523- 535.

DOI

吴雨蓓, 刘欣禹. 小学生共情与亲社会行为的关系. 教育观察, 2020, 9 (3): 84- 85, 97.

武侠, 包玉玲, 吕欢欢. 儿童共情能力及其发展: 回顾与前瞻. 绍兴文理学院学报, 2020, 40 (6): 1- 9.

颜志强, 苏彦捷. 认知共情和情绪共情的发展差异: 元分析初探. 心理发展与教育, 2021, 37 (1): 1- 9.

DOI

袁晓劲, 刘昌, 柳林. 共情的心理加工过程机制. 心理技术与应用, 2019, 7 (11): 683- 692.

Addabbo, M., Bolognini, N., & Turati, C. Neural time course of pain observation in infancy. Developmental Science, 2021, 24 (4): e13074.

DOI

Aziz-Zadeh, L., Sheng, T., & Gheytanchi, A. Common premotor regions for the perception and production of prosody and correlations with empathy and prosodic ability. PLoS One, 2010, 5 (1): e8759.

DOI

Barr, R. G., Hopkins, B., & Green, J. A. Crying as a sign, a symptom, and a signal: Clinical, emotional and developmental aspects of infant and toddler crying. JAMA, 2001, 286 (17): 2166- 2167.

Blakemore, S. J. The social brain in adolescence. Nature Reviews Neuroscience, 2008, 9 (4): 267- 277.

DOI

Bradley, M. M., Greenwald, M. K., Petry, M. C., & Lang, P. J. (1992). Remembering pictures: Pleasure and arousal in memory. Journal of Experimental Psychology: Learning, Memory, and Cognition, 18(2), 379–390.

Brink, T. T., Urton, K., Held, D., Kirilina, E., Hofmann, M. J., Klann-Delius, G., … Kuchinke, L. The role of orbitofrontal cortex in processing empathy stories in 4- to 8-year-old children. Frontiers in Psychology, 2011, 2, 80.

DOI

Carrington, S. J., & Bailey, A. J. Are there theory of mind regions in the brain? A review of the neuroimaging literature. Human Brain Mapping, 2009, 30 (8): 2313- 2335.

DOI

Carstensen, L. L., Fung, H. H., & Charles, S. T. Socioemotional selectivity theory and the regulation of emotion in the second half of life. Motivation and Emotion, 2003, 27 (2): 103- 123.

DOI

Catmur, C., Walsh, V., & Heyes, C. Associative sequence learning: The role of experience in the development of imitation and the mirror system. Philosophical Transactions of the Royal Society B: Biological Sciences, 2009, 364 (1528): 2369- 2380.

DOI

Cheng, Y. W., Chen, C. Y., & Decety, J. An EEG/ERP investigation of the development of empathy in early and middle childhood. Developmental Cognitive Neuroscience, 2014, 10, 160- 169.

DOI

Cheng, Y. W., Hung, A. Y., & Decety, J. Dissociation between affective sharing and emotion understanding in juvenile psychopaths. Development and Psychopathology, 2012, 24 (2): 623- 636.

DOI

Cohen, J. Statistical power analysis. Current Directions in Psychological Science, 1992, 1 (3): 98- 101.

DOI

Coll, M. P. Meta-analysis of ERP investigations of pain empathy underlines methodological issues in ERP research. Social Cognitive and Affective Neuroscience, 2018, 13 (10): 1003- 1017.

DOI

Decety, J. The neurodevelopment of empathy in humans. Developmental Neuroscience, 2010a, 32 (4): 257- 267.

DOI

Decety, J. To what extent is the experience of empathy mediated by shared neural circuits?. Emotion Review, 2010b, 2 (3): 204- 207.

DOI

Decety, J. Dissecting the neural mechanisms mediating empathy. Emotion Review, 2011, 3 (1): 92- 108.

DOI

Decety, J. The neural pathways, development and functions of empathy. Current Opinion in Behavioral Sciences, 2015, 3, 1- 6.

Decety, J., & Michalska, K. J. Neurodevelopmental changes in the circuits underlying empathy and sympathy from childhood to adulthood. Developmental Science, 2010, 13 (6): 886- 899.

DOI

Decety, J., Yang, C. Y., & Cheng, Y. W. Physicians down-regulate their pain empathy response: An event-related brain potential study. Neuroimage, 2010, 50 (4): 1676- 1682.

DOI

Delplanque, S., Silvert, L., Hot, P., & Sequeira, H. Event-related P3a and P3b in response to unpredictable emotional stimuli. Biological Psychology, 2005, 68 (2): 107- 120.

DOI

Fabes, R. A., Carlo, G., Kupanoff, K., & Laible, D. Early adolescence and prosocial/moral behavior I: The role of individual processes. The Journal of Early Adolescence, 1999, 19 (1): 5- 16.

DOI

Fan, Y., & Han, S. H. Temporal dynamic of neural mechanisms involved in empathy for pain: An event-related brain potential study. Neuropsychologia, 2008, 46 (1): 160- 173.

DOI

Fan, Y. T., Chen, C. Y., Chen, S. C., Decety, J., & Cheng, Y. W. Empathic arousal and social understanding in individuals with autism: Evidence from fMRI and ERP measurements. Social Cognitive and Affective Neuroscience, 2014, 9 (8): 1203- 1213.

DOI

Frith, C. D., & Singer, T. The role of social cognition in decision making. Philosophical Transactions of the Royal Society B: Biological Sciences, 2008, 363 (1511): 3875- 3886.

DOI

Gladstein, G. A. Understanding empathy: Integrating counseling, developmental, and social psychology perspectives. Journal of Counseling Psychology, 1983, 30 (4): 467- 482.

DOI

Grissom, R. J., & Kim, J. J. (2005). Effect sizes for research: A broad practical approach. New York: Routledge.

Grynberg, D., & Maurage, P. Pain and empathy: The effect of self-oriented feelings on the detection of painful facial expressions. PLoS One, 2014, 9 (7): e100434.

DOI

Hajcak, G., MacNamara, A., & Olvet, D. M. Event-related potentials, emotion, and emotion regulation: An integrative review. Developmental Neuropsychology, 2010, 35 (2): 129- 155.

DOI

Hajcak, G., & Olvet, D. M. The persistence of attention to emotion: Brain potentials during and after picture presentation. Emotion, 2008, 8 (2): 250- 255.

DOI

Higgins, J. P. T., Thompson, S. G., Deeks, J. J., & Altman, D. G. Measuring inconsistency in meta-analyses. BMJ, 2003, 327 (7414): 557- 560.

DOI

Jia, L., Zheng, Z., Sung, B., Compton, B. J., & Wang, J. Resisting repeated exposure: Characteristics of pain empathy for experienced physicians. Behavioural Brain Research, 2023, 436, 114099.

DOI

Kujawa, A., Hajcak, G., Torpey, D., Kim, J., & Klein, D. N. (2012). Electrocortical reactivity to emotional faces in young children and associations with maternal and paternal depression. Journal of Child Psychology and Psychiatry, and Allied Disciplines, 53(2), 207–215.

Lamm, C., Batson, C. D., & Decety, J. The neural substrate of human empathy: Effects of perspective-taking and cognitive appraisal. Journal of Cognitive Neuroscience, 2007, 19 (1): 42- 58.

DOI

Lamm, C., Decety, J., & Singer, T. Meta-analytic evidence for common and distinct neural networks associated with directly experienced pain and empathy for pain. NeuroImage, 2011, 54 (3): 2492- 2502.

DOI

Lang, P. J., & Bradley, M. M. Emotion and the motivational brain. Biological Psychology, 2010, 84 (3): 437- 450.

DOI

Lang, P. J., Greenwald, M. K., Bradley, M. M., & Hamm, A. O. Looking at pictures: Affective, facial, visceral, and behavioral reactions. Psychophysiology, 1993, 30 (3): 261- 273.

DOI

Lang, S., Yu, T., Markl, A., Müller, F., & Kotchoubey, B. (2011). Hearing others’ pain: Neural activity related to empathy. Cognitive, Affective, & Behavioral Neuroscience, 11(3), 386–395.

Ledoux, J. E. Emotion: Clues from the brain. Annual Review of Psychology, 1995, 46, 209- 235.

DOI

Leppänen, J. M., & Nelson, C. A. Tuning the developing brain to social signals of emotions. Nature Reviews Neuroscience, 2009, 10 (1): 37- 47.

DOI

Luna, B., & Sweeney, J. A. The emergence of collaborative brain function: FMRI studies of the development of response inhibition. Annals of the New York Academy of Sciences, 2004, 1021 (1): 296- 309.

DOI

Magai, C. (2008). Long-lived emotions. In Handbook of Emotions(pp. 376–394), New York: Guilford Press.

Mella, N., Studer, J., Gilet, A. L., & Labouvie-Vief, G. Empathy for pain from adolescence through adulthood: An event-related brain potential study. Frontiers in Psychology, 2012, 3, 501.

DOI

Meltzoff, A. N., & Decety, J. What imitation tells us about social cognition: A rapprochement between developmental psychology and cognitive neuroscience. Philosophical Transactions of the Royal Society B: Biological Sciences, 2003, 358 (1431): 491- 500.

DOI

Meng, J., Hu, L., Shen, L., Yang, Z., Chen, H., Huang, X. T., & Jackson, T. Emotional primes modulate the responses to others’ pain: An ERP study. Experimental Brain Research, 2012, 220 (3–4): 277- 286.

DOI

Meng, J., Li, Z. S., & Shen, L. Responses to others’ pain in adults with autistic traits: The influence of gender and stimuli modality. PLoS One, 2017, 12 (3): e0174109.

DOI

Moher, D., Liberati, A., Tetzlaff, J., Altman, D. G., & The PRISMA Group. Preferred reporting items for systematic reviews and meta-analyses: The PRISMA statement. PLoS Medicine, 2009, 6 (7): e1000097.

DOI

Moore, R. C., Dev, S. I., Jeste, D. V., Dziobek, I., & Eyler, L. T. Distinct neural correlates of emotional and cognitive empathy in older adults. Psychiatry Research: Neuroimaging, 2015, 232 (1): 42- 50.

DOI

Morris, J. S., Öhman, A., & Dolan, R. J. Conscious and unconscious emotional learning in the human amygdala. Nature, 1998, 393 (6684): 467- 470.

DOI

Morrison, I., Lloyd, D., Di Pellegrino, G., & Roberts, N. (2004). Vicarious responses to pain in anterior cingulate cortex: Is empathy a multisensory issue? Cognitive, Affective, & Behavioral Neuroscience, 4(2), 270−278.

Regenbogen, C., Schneider, D. A., Finkelmeyer, A., Kohn, N., Derntl, B., Kellermann, T., … Habel, U. The differential contribution of facial expressions, prosody, and speech content to empathy. Cognition & Emotion, 2012, 26 (6): 995- 1014.

DOI

Singer, T., & Lamm, C. The social neuroscience of empathy. Annals of the New York Academy of Sciences, 2009, 1156 (1): 81- 96.

DOI

Singer, T., Seymour, B., O’Doherty, J., Kaube, H., Dolan, R. J., & Frith, C. D. Empathy for pain involves the affective but not sensory components of pain. Science, 2004, 303 (5661): 1157- 1162.

DOI

Song, J., Wei, Y. Q., & Ke, H. The effect of emotional information from eyes on empathy for pain: A subliminal ERP study. PLoS One, 2019, 14 (12): e0226211.

DOI

Steinberg, L. A social neuroscience perspective on adolescent risk-taking. Developmental Review, 2008, 28 (1): 78- 106.

DOI

Sun, Y. B., Lin, X. X., Ye, W., Wang, N., Wang, J. Y., & Luo, F. A screening mechanism differentiating true from false pain during empathy. Scientific Reports, 2017, 7 (1): 11492.

DOI

Timmers, I., Park, A. L., Fischer, M. D., Kronman, C. A., Heathcote, L. C., Hernandez, J. M., & Simons, L. E. Is empathy for pain unique in its neural correlates? A meta-analysis of neuroimaging studies of empathy. Frontiers in Behavioral Neuroscience, 2018, 12, 289.

DOI

van Overwalle, F., & Baetens, K. Understanding others’ actions and goals by mirror and mentalizing systems: A meta-analysis. NeuroImage, 2009, 48 (3): 564- 584.

DOI

Vogel, E. K., & Luck, S. J. The visual N1 component as an index of a discrimination process. Psychophysiology, 2000, 37 (2): 190- 203.

DOI

Wang, H., Ao, L. H., Gao, Y., Liu, Y. J., & Zhang, X. J. Empathy for pain in individuals influenced by moral identity: Evidence from an ERP study. Physiology & Behavior, 2023, 266, 114202.

DOI

Outlines

/

〈 〉

Copyright © Editorial office of Studies of Psychology and Behavior
Tel: 022-23540231, 23541213 E-mail: psybeh@126.com